
Direto ao assunto
- Resumo rápido
- O caminho da água: do solo até a folha
- Absorção de água e sais minerais
- Osmose, turgescência e plasmólise
- Pressão de raiz: o empurrão de baixo
- Capilaridade: a ajuda dos tubos finos
- Teoria da coesão-tensão: a explicação principal
- Transporte no xilema e no floema: duas seivas, dois sentidos
- O que é transpiração e por que a planta “perde” água
- Transpiração estomática, cuticular e lenticelar
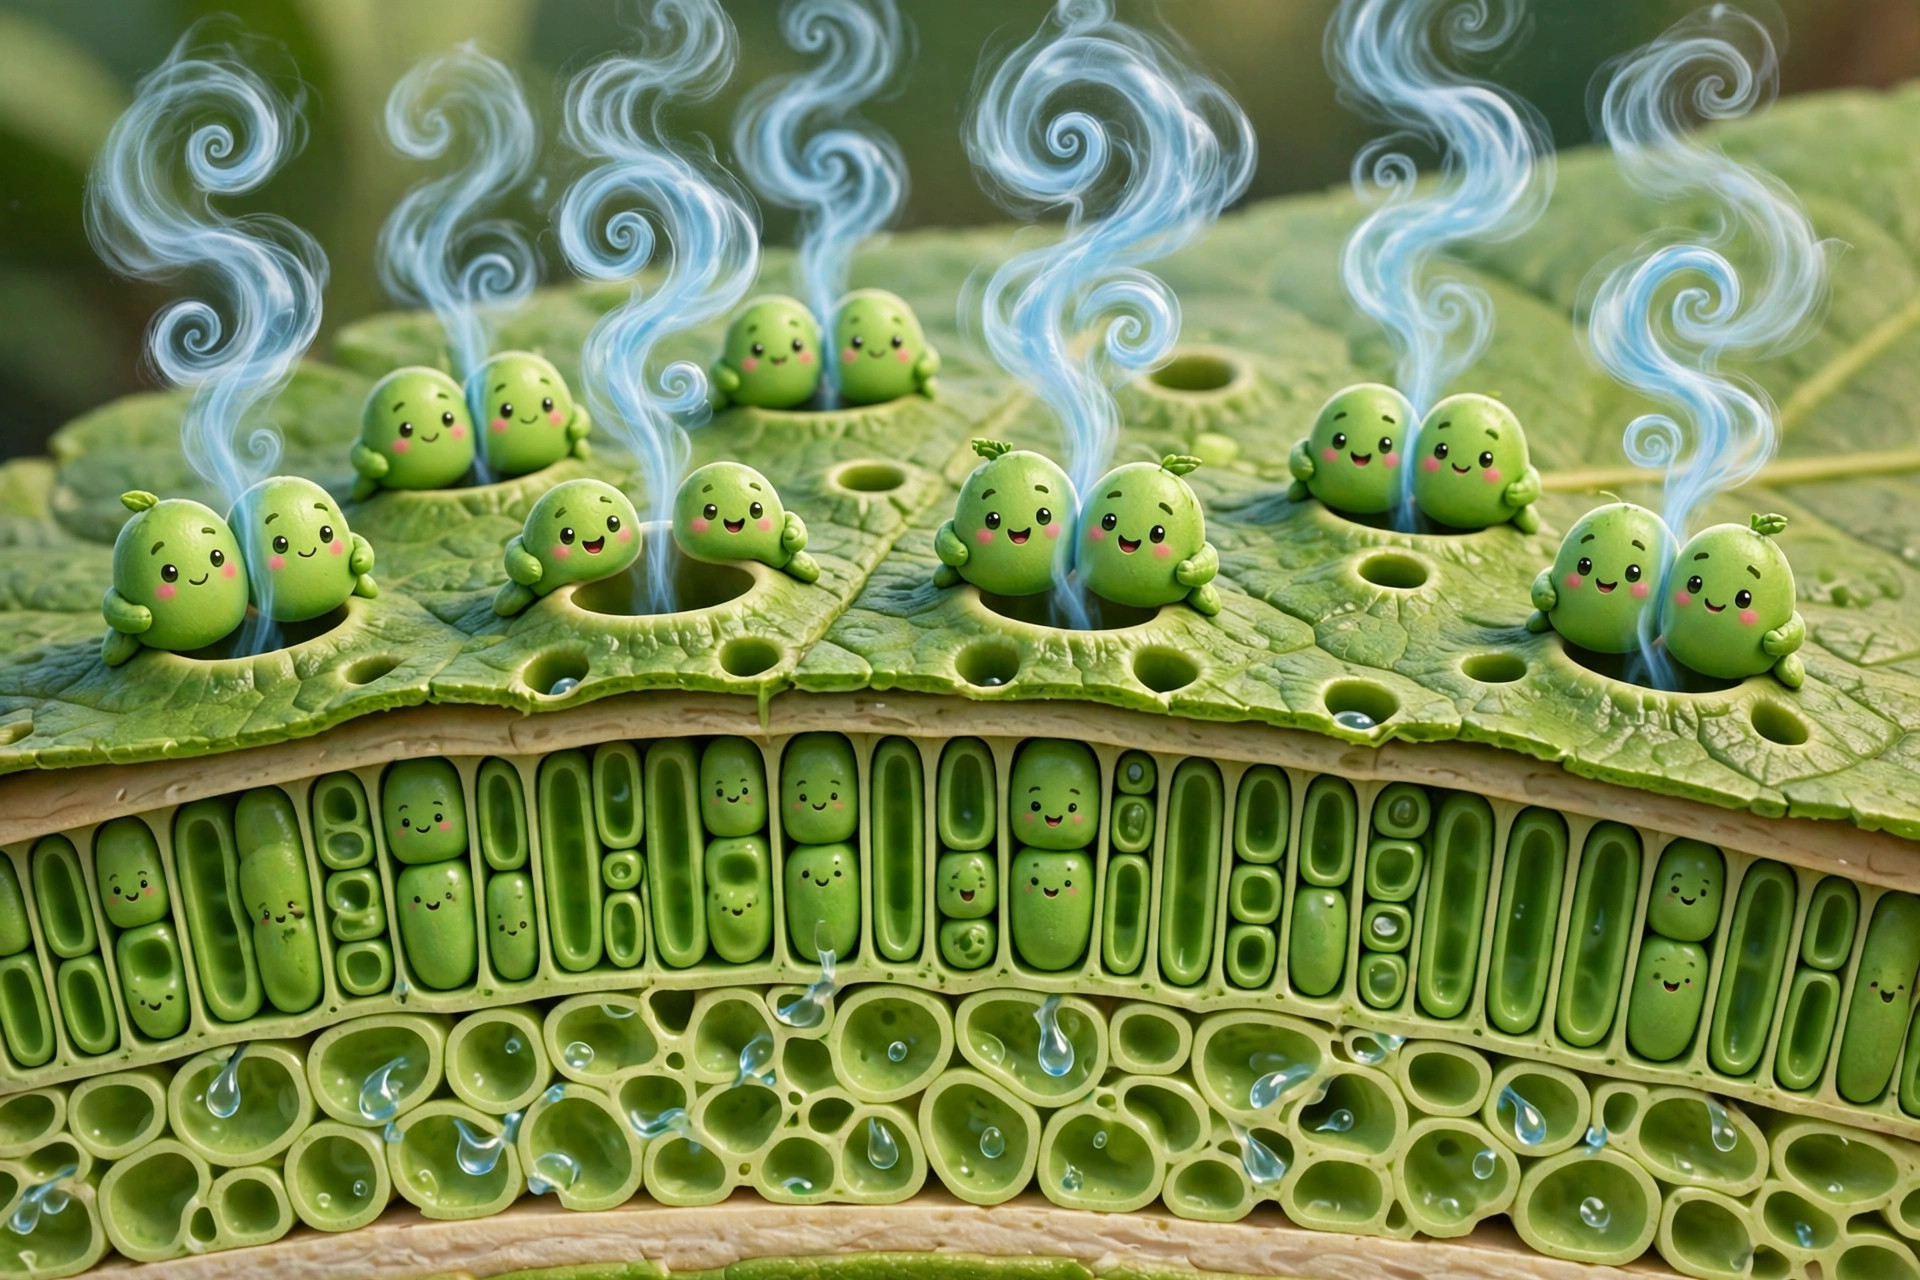
- Estômatos: as portas da folha
- Fatores que abrem e fecham os estômatos
- Gutação: quando a planta “chora” gotas
- Fotossíntese, respiração e transpiração: o triângulo da folha
- Adaptações de plantas de ambientes secos e úmidos
- Tabelas comparativas
- Para continuar estudando
- Mapa mental
- SAQ — Perguntas e respostas rápidas
- Questões comentadas
- Dica do professor
- Atenção/cuidado
- Conexão com outras áreas
Resumo rápido
Incidência: ♨️ Morno. A fisiologia vegetal — e, dentro dela, a transpiração — aparece com frequência moderada no ENEM e nos vestibulares, quase sempre ligada a situações do cotidiano: uma planta que murcha ao sol, uma muda que não pega depois do transplante, um cacto que sobrevive no sertão, uma folha que perde água mesmo sem parecer. É um tema que rende questões de interpretação, gráficos e comparações, porque mistura física (difusão, osmose, capilaridade e tensão), química (soluções e potencial hídrico) e biologia (anatomia da raiz, do caule e da folha). Se você dominar o caminho da água dentro da planta, do solo até a atmosfera, e entender por que a planta abre e fecha os estômatos, grande parte da prova fica resolvida.
Em poucas palavras: a planta absorve água e sais minerais pela raiz, transporta essa seiva bruta pelo xilema até as folhas, perde parte dessa água na forma de vapor pela transpiração e usa outra parte na fotossíntese. A seiva elaborada, rica em açúcares produzidos na folha, volta pelo floema para alimentar todas as partes da planta. Nada disso acontece por acaso: cada etapa depende de diferenças de concentração, de pressão e de um delicado equilíbrio entre captar gás carbônico para fotossintetizar e não perder água demais. Quando esse equilíbrio se quebra, a planta murcha, fecha os estômatos, reduz a fotossíntese e pode até morrer.
Para situar este tema dentro da Biologia, vale lembrar que a fisiologia vegetal conversa diretamente com a fotossíntese: sem água chegando à folha, não há fotossíntese; sem estômato aberto, não entra gás carbônico. Por isso, revise também a matéria sobre Fotossíntese depois desta leitura. Aqui, o foco é o movimento da água e dos solutos, os mecanismos que o explicam e as adaptações que permitem às plantas viver em desertos, brejos, restingas e florestas úmidas.
Ideia central para guardar: a água sobe na planta principalmente por um mecanismo passivo, puxada de cima para baixo — ou melhor, das folhas para a raiz — pela transpiração. A planta não “bombeia” água como um coração bombeia sangue. Ela cria, com a perda de vapor pelas folhas, uma tensão que puxa a coluna de água inteira, como se fosse um canudo sugado lá de cima. Essa é a teoria da coesão-tensão, a mais aceita hoje, e ela aparece em quase toda questão bem elaborada sobre o assunto.
Como estudar este tema: primeiro, memorize o trajeto da água (solo → pelos absorventes → córtex da raiz → xilema → caule → folha → atmosfera). Depois, entenda cada força envolvida (osmose, pressão de raiz, capilaridade e coesão-tensão) e em que situação cada uma predomina. Em seguida, estude os estômatos como se fossem portas com guardas: quem abre, quem fecha e por quê. Por fim, treine com gráficos de transpiração ao longo do dia e com comparações entre plantas de ambientes diferentes. O resto é detalhe — importante, mas detalhe.
O caminho da água: do solo até a folha
Imagine uma árvore de dez metros de altura. A água que entra pela raiz precisa vencer a gravidade e chegar às folhas do topo, sem bomba, sem coração, sem motor. Como isso é possível? A resposta envolve várias forças trabalhando juntas, em momentos diferentes, e é justamente essa combinação que as provas adoram cobrar. Nenhuma explicação isolada dá conta de tudo: a pressão de raiz empurra um pouco, a capilaridade ajuda em vasos finos, mas quem realmente sustenta o transporte em plantas altas é a tensão gerada pela transpiração.
Tudo começa no solo. A água do solo, com sais minerais dissolvidos, está disponível nos espaços entre as partículas de terra. As raízes, especialmente na região dos pelos absorventes — aquelas extensões finíssimas das células da epiderme da raiz — aumentam enormemente a superfície de contato com o solo. É por esses pelos que a água entra, em grande parte por osmose: a solução dentro das células da raiz é mais concentrada em solutos do que a água do solo, então a água tende a entrar. Os sais minerais, por sua vez, entram muitas vezes por transporte ativo, gastando energia, porque a planta precisa deles em concentração maior do que a do solo. Essa diferença é fundamental: a planta não absorve passivamente “tudo que vem”; ela seleciona.
Depois de entrar pelos pelos absorventes, a água atravessa o córtex da raiz por dois caminhos principais: por dentro das células (via simplástica, passando de citoplasma em citoplasma pelos plasmodesmos) e pelos espaços entre as células e pelas paredes celulares (via apoplástica). Ao chegar à endoderme, uma camada de células com uma faixa impermeável chamada estria de Caspary, o caminho apoplástico é bloqueado: a água é obrigada a atravessar a membrana de uma célula endodérmica. Isso funciona como um filtro, um posto de controle que impede a entrada livre de substâncias indesejadas no cilindro central, onde estão os vasos condutores.
Do cilindro central, a água entra no xilema — o conjunto de vasos que conduz a seiva bruta, formada por água e sais minerais. O xilema é tecido morto em sua parte condutora: traqueídes e elementos de vaso são células sem conteúdo vivo, com paredes reforçadas por lignina, formando tubos contínuos. Por serem mortos e ocos, oferecem pouca resistência à passagem da água. É por esses tubos que a seiva bruta sobe pelo caule até as folhas, onde será usada na fotossíntese ou perdida na transpiração.
Um erro comum é pensar que a raiz “suga” a água com força própria o tempo todo. Na verdade, a absorção depende muito do que acontece lá em cima, nas folhas. Quando a folha transpira, ela “puxa” a água; quando a transpiração para, à noite ou em ambiente muito úmido, a absorção diminui bastante. A planta é um sistema integrado: raiz, caule e folha funcionam como um único tubo contínuo de água, do solo à atmosfera.
Exemplo do cotidiano: quando você rega uma planta murcha e ela se recupera em poucas horas, está vendo a osmose e o restabelecimento da turgescência em ação. As células, que haviam perdido água e murchado, voltam a ficar cheias e firmes. Já quando uma planta murcha mesmo com o solo úmido, em dia de calor extremo e vento forte, o problema pode ser o contrário: a folha perde água mais rápido do que a raiz consegue repor. O solo tem água, mas a velocidade de perda é maior que a de reposição.
Absorção de água e sais minerais
A absorção de água é, em essência, um fenômeno osmótico. Osmose é a passagem de solvente (neste caso, a água) de uma região menos concentrada em solutos para uma região mais concentrada, através de uma membrana semipermeável. Como as células da raiz mantêm seu interior mais concentrado que a solução do solo, a água entra espontaneamente. Se o solo ficar salgado demais — por exemplo, com excesso de adubo ou em solo salino —, a situação se inverte: a solução do solo fica mais concentrada que o interior da célula, a água sai da raiz por osmose e a planta murcha, mesmo com o solo “molhado”. É por isso que adubar em excesso queima a planta: não é o adubo em si que “queima”, é a perda de água por osmose.
Os sais minerais seguem outra lógica. Íons como nitrato, potássio, fosfato, cálcio e magnésio são absorvidos, em grande parte, por transporte ativo, com gasto de ATP, através de proteínas transportadoras na membrana das células da raiz. Isso permite que a planta acumule esses íons em concentração maior do que a do solo, o que é essencial, pois são nutrientes: o nitrogênio entra na composição de proteínas e clorofila, o magnésio é o átomo central da clorofila, o potássio regula a abertura dos estômatos, o fósforo faz parte do ATP e dos ácidos nucleicos, o cálcio compõe a parede celular. Sem energia, sem respiração nas células da raiz, a absorção de sais cai — por isso solos encharcados e sem oxigênio prejudicam a planta: as raízes “afogam”, respiram mal, produzem pouco ATP e absorvem menos nutrientes.
Outro ponto importante: a absorção acontece melhor na região dos pelos absorventes, logo atrás da ponta da raiz, onde as células ainda são jovens e a epiderme é fina. Na ponta, a coifa protege o meristema; mais acima, a raiz forma tecidos de revestimento mais espessos e perde capacidade de absorção. Por isso, ao transplantar uma muda, é fundamental preservar as raízes finas e os pelos absorventes: se eles forem destruídos, a planta perde sua principal porta de entrada de água e murcha rapidamente, mesmo sendo regada. É o famoso “choque de transplante”.
A água que entra na raiz não vai direto para o xilema sem controle. A estria de Caspary, na endoderme, obriga a água a cruzar uma membrana celular, o que permite à planta regular o que entra. Substâncias tóxicas ou em excesso podem ser barradas nesse ponto. Pense na endoderme como a portaria de um prédio: todo mundo que vem pela rua (via apoplástica) precisa passar pela portaria (membrana) antes de entrar no elevador (xilema).
Para não confundir: água entra principalmente por osmose (passivo, sem gasto de energia); sais entram principalmente por transporte ativo (com gasto de energia). A planta gasta energia para se alimentar de minerais, mas não para beber água — a água entra “de graça”, seguindo o gradiente osmótico, desde que o solo não esteja mais concentrado que a raiz.
Osmose, turgescência e plasmólise
Osmose não é só um conceito de citologia: é o motor da entrada de água e da firmeza da planta. Quando uma célula vegetal está cheia de água, seu vacúolo se enche, empurra o citoplasma contra a parede celular e gera a pressão de turgescência. É essa pressão que mantém a folha firme, ereta, “durinha”. Uma planta herbácea se sustenta, em grande parte, não por madeira, mas por turgescência: suas células são como balões cheios de água pressionando a parede.
Quando a planta perde mais água do que absorve, as células perdem turgescência: o vacúolo esvazia, a membrana se afasta um pouco da parede e a planta murcha. Se a perda continuar e o meio externo ficar hipertônico (mais concentrado), ocorre a plasmólise: a membrana plasmática se desprende visivelmente da parede celular, o citoplasma se contrai e a célula pode morrer se a situação não for revertida a tempo. A deplasmólise é o processo inverso: colocando a célula em meio hipotônico, a água volta a entrar e a célula recupera a turgescência.
Esse par turgescência/plasmólise explica também o movimento dos estômatos, como veremos adiante: as células-guarda abrem o poro quando estão túrgidas e o fecham quando murcham. É a mesma física, aplicada a uma porta microscópica.
Exemplo clássico de prova: uma célula vegetal colocada em solução salina concentrada murcha (plasmólise); colocada em água pura, incha até o limite da parede (turgescência máxima), sem estourar, porque a parede celular rígida impede a ruptura. É por isso que a célula vegetal não explode em água destilada, ao contrário de uma célula animal, que não tem parede: a parede funciona como um colete que limita a expansão.
Vale ainda entender o conceito de potencial hídrico, que as questões mais elaboradas usam: a água sempre se move de um potencial hídrico maior (menos negativo, mais “livre”) para um menor (mais negativo, mais “presa” por solutos ou por tensão). Solo úmido tem potencial alto; folha transpirando tem potencial muito baixo, porque a água ali está sob tensão. É essa diferença de potencial, do solo até a folha e da folha até o ar, que mantém o fluxo contínuo. Quando o ar está seco, o potencial do ar é baixíssimo e a transpiração é intensa; quando o ar está saturado de umidade, o gradiente diminui e a transpiração cai.
Pressão de raiz: o empurrão de baixo
A pressão de raiz, ou pressão radicular, é uma pressão positiva gerada na raiz quando sais minerais são bombeados ativamente para o interior do xilema. Como o xilema fica mais concentrado em solutos, a água entra por osmose e empurra a coluna de água para cima. É um mecanismo real, mensurável, mas limitado: ele consegue elevar a água poucos metros, no máximo, e funciona melhor quando a transpiração é baixa — à noite, por exemplo, ou em dias úmidos e nublados.
A prova mais visível da pressão de raiz é a gutação, que veremos em seção própria: gotículas de água que aparecem nas bordas das folhas de manhã cedo, quando o solo está úmido e o ar está saturado. A planta, sem conseguir transpirar (porque o ar já está cheio de vapor), empurra água para fora por poros especiais, os hidatódios. É a pressão de raiz “vazando” pela folha.
Por que a pressão de raiz sozinha não explica uma árvore de trinta metros? Porque a pressão gerada é pequena e, além disso, à noite a planta também precisa de água, mas a pressão de raiz diminui quando a respiração radicular diminui. Em plantas altas, o transporte principal acontece de dia, com os estômatos abertos e a transpiração puxando a água. A pressão de raiz é um coadjuvante útil, não a protagonista.
Dica de prova: se a questão fala de planta pequena, à noite, com gutação, pense em pressão de raiz. Se fala de árvore alta, de dia, com transpiração intensa, pense em coesão-tensão. As bancas adoram contrastar os dois mecanismos justamente para testar se o estudante sabe o limite de cada um.
Capilaridade: a ajuda dos tubos finos
Capilaridade é a tendência de um líquido subir por um tubo fino, por causa da adesão entre o líquido e a parede do tubo e da coesão entre as moléculas do líquido. Quanto mais fino o tubo, maior a subida. Nos vasos do xilema, que são finos, a capilaridade realmente ajuda a água a subir alguns centímetros ou, no máximo, poucos metros. É um efeito real, mas insuficiente para explicar o transporte até o topo de árvores altas.
Um experimento simples mostra isso: coloque um tubo capilar fino em um copo de água colorida e veja a água subir alguns centímetros acima do nível do copo. Agora imagine um tubo com o diâmetro de um vaso de xilema: a subida seria maior, mas jamais chegaria a dezenas de metros. Além disso, a capilaridade sozinha não mantém um fluxo contínuo: ela eleva a água até certo ponto e para. Para haver fluxo constante, é preciso que a água seja retirada lá em cima — e é exatamente isso que a transpiração faz.
Portanto, capilaridade é um fator coadjuvante: ajuda, soma-se às outras forças, mas não sustenta sozinha o transporte em plantas de grande porte. Nas questões, desconfie de alternativas que colocam a capilaridade como “a” explicação do transporte em árvores: é uma meia-verdade clássica, e meia-verdade, em prova de múltipla escolha, é alternativa errada.
Teoria da coesão-tensão: a explicação principal
A teoria da coesão-tensão, proposta por Dixon e Joly no final do século XIX e ainda hoje a mais aceita, explica o transporte de água em plantas altas por três propriedades da água e um motor: a coesão, a adesão e a tensão gerada pela transpiração.
Coesão é a atração entre moléculas de água, por pontes de hidrogênio. As moléculas de água “grudam” umas nas outras com força considerável, formando uma coluna contínua dentro do xilema, como uma corda de moléculas ligadas. Adesão é a atração entre a água e a parede do vaso, também por pontes de hidrogênio, que ajuda a sustentar a coluna contra a gravidade e impede que ela desça ou se rompa facilmente. Tensão é o “puxão” criado quando a água evapora das paredes das células do mesófilo foliar para os espaços intercelulares e sai pelos estômatos: ao perder água, essas células puxam água das vizinhas, que puxam do xilema, que puxa da raiz, que puxa do solo. A coluna inteira é tracionada de cima para baixo, como se alguém puxasse uma corda lá do topo.
O resultado é impressionante: a água no xilema fica sob tensão, ou seja, sob pressão negativa, podendo chegar a valores muito baixos de potencial hídrico. Em vez de ser empurrada de baixo, ela é puxada de cima. É um mecanismo passivo: a planta não gasta energia diretamente para subir a água; a energia vem do sol, que evapora a água na folha, e da atmosfera seca, que “puxa” o vapor.
Essa teoria explica vários fatos observados: o transporte é mais rápido de dia, quando a transpiração é maior; ele para ou diminui muito à noite, quando os estômatos fecham; ele é mais intenso em dias quentes, secos e com vento; e ele pode ser interrompido por bolhas de ar (embolia) no xilema, que quebram a coluna de água como um nó em uma corda. Quando um vaso emboliza, a planta pode contornar o problema usando vasos vizinhos, mas se muitos vasos forem afetados, a folha murcha e pode secar.
Analogia que ajuda a memorizar: pense em um canudo mergulhado em um copo de suco. Você não empurra o suco de baixo; você suga de cima, criando uma pressão menor na boca, e o líquido sobe. Na planta, a “sucção” é a transpiração, o “canudo” é o xilema e a “corda” que não arrebenta é a coesão entre as moléculas de água. Se entrar ar no canudo, a sucção falha — é a embolia.
Um detalhe que costuma cair: a teoria da coesão-tensão depende da continuidade da coluna de água. Por isso, vasos com paredes reforçadas por lignina são importantes: eles resistem à tensão sem colapsar, como um cano rígido resiste à sucção sem amassar. Plantas herbáceas, com vasos menos reforçados, dependem mais da turgescência e murcham com facilidade quando a tensão aumenta demais.
Transporte no xilema e no floema: duas seivas, dois sentidos
É comum confundir xilema e floema, mas a distinção é simples quando se pensa em “o que vai” e “para onde vai”. O xilema conduz a seiva bruta (água + sais minerais) da raiz para as folhas, em sentido ascendente, principalmente por coesão-tensão. É tecido morto, com paredes lignificadas, e funciona o ano inteiro enquanto houver transpiração. O floema conduz a seiva elaborada (rica em açúcares, sobretudo sacarose, além de aminoácidos, hormônios e outros compostos orgânicos) das folhas — as fontes, onde a fotossíntese produz alimento — para os drenos, que são as partes que consomem ou armazenam alimento: raízes, frutos, sementes, gemas em crescimento e caules subterrâneos. O fluxo no floema pode ser ascendente ou descendente, dependendo de onde está a fonte e onde está o dreno, e é tecido vivo, formado por células crivosas e células companheiras.
O mecanismo mais aceito para o floema é a teoria do fluxo de pressão (ou fluxo em massa), proposta por Münch: nas folhas, o açúcar é carregado ativamente para o floema, o que aumenta a concentração de solutos ali; a água entra por osmose, aumenta a pressão e empurra a seiva em direção aos drenos, onde o açúcar é descarregado e a água sai, retornando ao xilema. É como encher um balão em uma ponta de um tubo e esvaziá-lo na outra: a diferença de pressão move o conteúdo. Ao contrário do xilema, o floema depende de gasto de energia no carregamento e no descarregamento, porque o açúcar é transportado contra gradientes em vários pontos.
Um experimento clássico que prova a função do floema é o anelamento, ou “anel de Malpighi”: retira-se um anel de casca (onde está o floema) do caule, sem cortar o xilema. A parte acima do anel continua recebendo água e incha, acumulando açúcares, porque a seiva elaborada não consegue descer; a parte abaixo do anel definha e a raiz pode morrer por falta de alimento. É por isso que descascar completamente o tronco de uma árvore a mata: não é a falta de água que a mata primeiro, é a interrupção do alimento para a raiz. Agricultores usam o anelamento de forma controlada em frutíferas para aumentar o tamanho dos frutos, justamente porque o açúcar fica retido acima do anel.
Na primavera, um detalhe interessante inverte o sentido habitual: em árvores caducifólias, antes das folhas brotarem, as reservas de amido armazenadas no caule e na raiz são convertidas em açúcares e sobem pelo floema para alimentar as gemas. Ou seja, o dreno vira fonte temporariamente. É um ótimo exemplo de que “fonte” e “dreno” não são órgãos fixos, mas papéis que mudam conforme a fase da planta.
Resumo para memorizar: xilema = seiva bruta, sobe, morto, passivo; floema = seiva elaborada, vai da fonte ao dreno (sobe ou desce), vivo, com gasto de energia no carregamento. Se a questão perguntar “qual tecido é interrompido pelo anelamento?”, responda floema. Se perguntar “por onde sobe a água?”, responda xilema.
O que é transpiração e por que a planta “perde” água
Transpiração é a perda de água pela planta na forma de vapor para a atmosfera. À primeira vista, parece desperdício: por que uma planta que lutou para absorver água iria perdê-la? A resposta é que a transpiração não é um objetivo em si, mas uma consequência inevitável de um problema maior: para fotossintetizar, a planta precisa abrir os estômatos e captar gás carbônico do ar; ao abrir essa porta para o gás entrar, o vapor de água sai. É um custo necessário. Além disso, a transpiração traz benefícios: ela puxa a seiva bruta para cima, transportando sais minerais; ela resfria a folha, como o suor resfria o corpo humano; e ela mantém o fluxo de nutrientes da raiz até a folha.
Estima-se que a maior parte da água absorvida pela planta — mais de 90% em muitos casos — seja perdida na transpiração; apenas uma pequena fração é usada na fotossíntese ou fica retida no crescimento. Isso não é ineficiência, é o preço do transporte passivo: para subir toneladas de água ao longo da vida sem gastar energia de bombeamento, a planta aceita perder a maior parte dela pelo caminho. É um sistema barato em energia, caro em água — e por isso as plantas de ambientes secos precisaram inventar truques para economizar.
A transpiração acontece por três vias principais, que veremos em detalhe: a estomática (pelos estômatos, a mais importante), a cuticular (através da cutícula, a camada cerosa que reveste a epiderme) e a lenticelar (pelas lenticelas, poros no caule e nas raízes de plantas lenhosas). Somadas, elas determinam a taxa de transpiração da planta em cada momento do dia.
É importante distinguir transpiração de evaporação simples: evaporação é um fenômeno físico, que acontece em qualquer superfície molhada; transpiração é um fenômeno biológico, regulado pela planta, que pode abrir ou fechar estômatos, engrossar a cutícula, enrolar folhas e mudar a orientação foliar para controlar a perda. A planta não é um pano molhado ao sol: ela regula.
Transpiração estomática, cuticular e lenticelar
Transpiração estomática é a perda de vapor pelos estômatos, poros microscópicos da epiderme foliar, geralmente mais numerosos na face inferior da folha. É a via dominante: em uma folha típica, responde por cerca de 80% a 90% da perda total quando os estômatos estão abertos. A água evapora das paredes úmidas das células do mesófilo para os espaços intercelulares da folha e sai pelo ostíolo, a abertura do estômato. Como a planta pode abrir e fechar os estômatos, essa é a única via que ela controla rapidamente, em minutos.
Transpiração cuticular é a perda de vapor diretamente através da cutícula, a camada de cutina e ceras que impermeabiliza a epiderme. É uma perda lenta e contínua, que não pode ser interrompida rapidamente: mesmo com os estômatos fechados, a folha continua perdendo um pouco de água pela cutícula. Em folhas com cutícula espessa e cerosa, como as de muitas plantas de ambiente seco, essa perda é mínima; em folhas finas, de plantas de sombra e de ambientes úmidos, pode ser significativa. Em termos de prova, lembre: cuticular é pequena, contínua e não regulável a curto prazo.
Transpiração lenticelar é a perda de vapor pelas lenticelas, pequenas aberturas na periderme de caules e raízes de plantas lenhosas, que permitem trocas gasosas nos tecidos internos. É quantitativamente pequena em comparação com a foliar, mas é a principal via de perda em árvores caducifólias no inverno, quando estão sem folhas, e em caules jovens. Também não é regulável como a estomática: as lenticelas ficam sempre abertas.
Uma comparação útil: se a folha fosse uma casa, a transpiração estomática seria a perda pelas janelas, que podem ser abertas ou fechadas; a cuticular seria a perda pelas frestas das paredes, pequena mas constante; a lenticelar seria a perda pela chaminé do porão, longe das janelas principais. A planta controla as janelas; as frestas e a chaminé ela só consegue reduzir com reformas estruturais, ao longo do desenvolvimento — engrossando a cutícula, por exemplo.
Estômatos: as portas da folha
O estômato é formado por duas células-guarda, em forma de rim ou de haltere (nas gramíneas), que delimitam uma abertura chamada ostíolo. Ao redor, podem existir células subsidiárias. Quando as células-guarda estão túrgidas, cheias de água, suas paredes desiguais — mais espessas na face voltada para o ostíolo e mais finas na face externa — fazem com que elas se curvem para fora e o ostíolo se abra. Quando murcham, perdem a curvatura e o ostíolo se fecha. É um mecanismo elegante, puramente físico, comandado por mudanças de turgescência.
O que faz a célula-guarda ficar túrgida? O mecanismo mais aceito envolve íons potássio e a fotossíntese das próprias células-guarda, que contêm cloroplastos. De dia, com luz, as células-guarda fotossintetizam, produzem açúcares e, estimuladas pela luz azul, bombeiam íons potássio para dentro, com gasto de ATP. A entrada de potássio aumenta a concentração de solutos dentro da célula, a água entra por osmose, a célula fica túrgida e o estômato abre. À noite, sem luz, o processo se inverte: o potássio sai, a água sai por osmose, a célula murcha e o estômato fecha.
Outro regulador fundamental é o ácido abscísico (ABA), o hormônio do estresse hídrico. Quando a planta percebe falta de água, as raízes e as folhas produzem ABA, que sinaliza às células-guarda para fechar os estômatos, mesmo de dia. É um mecanismo de emergência: a planta sacrifica a fotossíntese para não desidratar. Por isso, em dias de seca, mesmo com sol forte, muitas plantas fecham os estômatos ao meio-dia, quando a transpiração seria máxima — o chamado “fechamento do meio-dia”.
A concentração de gás carbônico dentro da folha também influencia: quando o CO₂ interno está alto (porque a fotossíntese está lenta ou a respiração está alta), o estômato tende a fechar; quando está baixo (porque a fotossíntese está consumindo CO₂ rapidamente), tende a abrir, para captar mais gás. É um sistema de retroalimentação: a folha abre quando precisa de CO₂ e fecha quando já tem o suficiente ou quando o custo em água é alto demais.
Onde ficam os estômatos? Na maioria das plantas terrestres, predominam na face inferior (abaxial) da folha, mais sombreada, fresca e úmida, o que reduz a perda de água. Plantas aquáticas flutuantes, como a vitória-régia, têm estômatos na face superior, porque a inferior está em contato com a água. Gramíneas e algumas plantas de ambientes secos têm estômatos em depressões ou criptas, protegidos do vento, o que também reduz a transpiração. Esses detalhes de posição são adaptações, não caprichos: cada posição equilibra captação de CO₂ e perda de água.
Fatores que abrem e fecham os estômatos
Vários fatores ambientais modulam a abertura estomática, e as provas adoram gráficos que cruzam dois ou três deles. Vamos organizar os principais:
Luz: em geral, abre os estômatos. A luz azul, em especial, estimula o bombeamento de potássio nas células-guarda. É por isso que a transpiração é maior de dia e menor à noite. Exceção famosa: plantas CAM, como cactos e suculentas, abrem os estômatos à noite e os fecham de dia, para economizar água — veremos isso nas adaptações.
Concentração de CO₂: CO₂ baixo dentro da folha estimula a abertura (a folha precisa captar gás); CO₂ alto estimula o fechamento. Em ambientes com muito CO₂, a planta pode fotossintetizar com os estômatos menos abertos, economizando água — um efeito discutido no contexto das mudanças climáticas.
Umidade do ar: ar úmido reduz a transpiração, porque o gradiente de vapor entre a folha e o ar diminui; ar seco aumenta a transpiração, porque o gradiente é grande. Mas atenção: umidade alta não “abre” o estômato diretamente; ela apenas reduz a velocidade de saída do vapor. O estômato pode estar aberto e, mesmo assim, transpirar pouco, se o ar estiver saturado.
Temperatura: até certo ponto, o aumento da temperatura aumenta a transpiração, porque o ar quente comporta mais vapor e a evaporação é mais rápida. Acima de certo limite, porém, a planta fecha os estômatos por estresse hídrico e a transpiração cai, mesmo com calor. É por isso que o gráfico de transpiração ao longo do dia nem sempre acompanha a temperatura em linha reta: sobe de manhã, atinge um pico e pode cair ao meio-dia, quando a planta se protege.
Vento: o vento remove a camada de ar úmido que fica parada junto à folha (a camada limítrofe) e a substitui por ar seco, aumentando o gradiente e, portanto, a transpiração. Por isso, plantas de regiões ventosas costumam ter folhas pequenas, enroladas ou com pelos, que seguram essa camada de ar úmido. Vento forte e constante é um fator de estresse hídrico tão importante quanto o calor.
Disponibilidade de água no solo: solo seco leva à produção de ABA e ao fechamento estomático, reduzindo a transpiração e a fotossíntese. É uma defesa: melhor fotossintetizar menos do que morrer desidratada. Solo encharcado, por outro lado, pode prejudicar a absorção de sais por falta de oxigênio na raiz, como já vimos, mesmo com água abundante.
Regra de ouro para gráficos: quando a questão mostrar um gráfico de transpiração ao longo do dia, procure o pico no fim da manhã ou início da tarde, a queda à noite (estômatos fechados) e, em plantas de ambiente seco, uma depressão ao meio-dia (fechamento de proteção). Se o gráfico mostrar transpiração alta à noite, desconfie: ou é planta CAM, ou é transpiração cuticular/lenticelar, ou o gráfico está medindo outra coisa.
Gutação: quando a planta “chora” gotas
Gutação é a eliminação de água líquida, em forma de gotas, pelas bordas ou pontas das folhas, através de estruturas chamadas hidatódios. Acontece tipicamente de madrugada ou de manhã cedo, quando o solo está úmido, a transpiração é quase nula (ar saturado, estômatos fechados) e a pressão de raiz continua empurrando água para cima. Sem saída pelo vapor, a água é empurrada para fora na forma líquida.
É fácil confundir gutação com orvalho, mas são fenômenos diferentes: o orvalho é a condensação do vapor de água da atmosfera sobre superfícies frias, durante a noite; a gutação é água que vem de dentro da planta, expelida ativamente pela pressão de raiz. Uma forma de distinguir: gotas de gutação aparecem nas bordas e pontas das folhas, em posições regulares, mesmo em noites sem queda forte de temperatura; o orvalho cobre todas as superfícies expostas, incluindo objetos inanimados.
As gotas de gutação não são água pura: contêm sais minerais e compostos orgânicos dissolvidos, e, ao evaporarem, podem deixar um resíduo esbranquiçado na borda da folha. Em plantas cultivadas, a gutação é sinal de solo bem úmido e pressão de raiz ativa — não é doença, nem “suor” da planta, nem sinal de que ela está “chorando” por excesso de rega, embora rega excessiva possa favorecê-la.
Para a prova: gutação = pressão de raiz + transpiração baixa + solo úmido + hidatódios + água líquida. Transpiração = perda de vapor + estômatos (ou cutícula/lenticelas) + ar seco, vento e luz favorecendo. Se a questão falar em “gotas nas folhas pela manhã”, pense em gutação e pressão de raiz; se falar em “vapor saindo da folha ao sol”, pense em transpiração e coesão-tensão.
Fotossíntese, respiração e transpiração: o triângulo da folha
Na folha, três processos acontecem ao mesmo tempo e competem pelo mesmo espaço: a fotossíntese, a respiração celular e a transpiração. Entender como eles se relacionam é essencial, porque as questões costumam pedir para comparar taxas ao longo do dia ou em diferentes condições de luz.
A fotossíntese usa água e gás carbônico, com luz, para produzir glicose e liberar oxigênio. A respiração usa glicose e oxigênio para produzir energia, liberando gás carbônico e água. São processos quase inversos, mas não simétricos: a fotossíntese só acontece com luz e nos cloroplastos; a respiração acontece o tempo todo, com ou sem luz, nas mitocôndrias. De dia, com luz forte, a fotossíntese supera a respiração: a planta absorve mais CO₂ do que libera e produz mais O₂ do que consome. À noite, sem fotossíntese, só resta a respiração: a planta libera CO₂ e consome O₂, como os animais.
O ponto de compensação luminoso é a intensidade de luz em que fotossíntese e respiração se equivalem: a planta produz exatamente o CO₂ que consome, e vice-versa. Abaixo desse ponto, a planta “gasta” mais do que produz e não cresce; acima, ela acumula matéria orgânica e cresce. Plantas de sombra têm ponto de compensação baixo (aproveitam pouca luz); plantas de sol têm ponto alto (precisam de muita luz para compensar uma respiração intensa). É por isso que uma planta de sol colocada à sombra definha, e uma planta de sombra colocada ao sol pode queimar: cada uma está ajustada a um regime de luz.
A transpiração entra nesse triângulo como mediadora: para fotossintetizar, a planta precisa de CO₂, que entra pelos estômatos; ao abrir os estômatos, ela perde água. Se ela fecha os estômatos para economizar água, a entrada de CO₂ cai e a fotossíntese diminui. É o dilema central da fisiologia vegetal: captar carbono sem perder água. Toda adaptação de planta de ambiente seco é, no fundo, uma tentativa de resolver esse dilema com mais eficiência.
Em dias quentes e secos, esse dilema se agrava: a planta pode fechar os estômatos ao meio-dia, a fotossíntese cai, a respiração continua alta por causa do calor e, em casos extremos, a planta pode entrar em balanço negativo de carbono, consumindo suas reservas. É o que acontece com lavouras em veranicos: mesmo com sol abundante, a produção cai porque a planta se protege da desidratação fechando as “portas”.
Um fenômeno ligado a isso é a fotorrespiração, que acontece em plantas C3 em dias quentes: a enzima rubisco, que deveria fixar CO₂, passa a fixar O₂, desperdiçando energia e reduzindo a eficiência da fotossíntese. Plantas C4 (como milho e cana-de-açúcar) e CAM (como cactos) desenvolveram mecanismos para concentrar CO₂ e reduzir a fotorrespiração, o que as torna mais eficientes em ambientes quentes e secos — um tema que costuma aparecer junto com transpiração em questões de ecologia e fisiologia.
Adaptações de plantas de ambientes secos e úmidos
As plantas não enfrentam a falta ou o excesso de água com um único truque, mas com um conjunto de adaptações anatômicas, fisiológicas e comportamentais. Comparar plantas xerófitas (de ambientes secos) e higrófitas (de ambientes úmidos) é um clássico de prova, porque cada característica tem uma função clara na economia de água.
Plantas de ambientes secos (xerófitas): o cacto é o exemplo mais famoso, mas não é o único. Suas adaptações incluem folhas reduzidas a espinhos (menos superfície para transpirar e proteção contra herbívoros), caule verde e suculento que fotossintetiza e armazena água, cutícula espessa e cerosa, estômatos em depressões ou criptas, pelos que seguram ar úmido junto à folha, raízes superficiais e extensas que captam rapidamente a água de chuvas raras, e metabolismo CAM: os estômatos abrem à noite, quando o ar está fresco e úmido, captam CO₂ e o armazenam na forma de ácido málico; de dia, com os estômatos fechados, o CO₂ armazenado é usado na fotossíntese. É uma solução brilhante: separar no tempo a captação de CO₂ e a fotossíntese, para não abrir as portas no calor do dia.
Outras xerófitas usam estratégias diferentes: algumas têm folhas enroladas, que criam uma câmara úmida interna; outras perdem as folhas na estação seca (caducifólias da caatinga) e ficam “dormindo” até a chuva voltar; outras ainda completam todo o ciclo de vida em poucas semanas após a chuva (plantas efêmeras do deserto), fugindo da seca em forma de semente. Todas essas estratégias têm o mesmo objetivo: reduzir a perda, armazenar o que for possível ou escapar do período crítico.
Plantas de ambientes úmidos (higrófitas): em florestas úmidas, brejos e margens de rios, o problema é o oposto: há água demais, pouca luz no interior da mata e risco de encharcamento. As folhas costumam ser grandes e finas, para captar o máximo de luz, com cutícula fina (a perda de água não é problema), estômatos numerosos e, muitas vezes, hidatódios bem desenvolvidos para eliminar o excesso de água por gutação. Algumas têm a ponta da folha alongada, o “gotejador”, que facilita o escoamento da água da chuva e evita o acúmulo de fungos e algas sobre a folha.
Plantas aquáticas flutuantes, como aguapés e vitórias-régias, têm estômatos na face superior, aerênquima (tecido com grandes espaços de ar) para flutuar e oxigenar as partes submersas, e raízes reduzidas, já que absorvem água e nutrientes por toda a superfície. Plantas submersas, por sua vez, muitas vezes nem têm estômatos ou cutícula espessa: trocam gases diretamente com a água, por difusão.
Plantas de ambientes salinos (halófitas): merecem uma menção especial, porque vivem um paradoxo: estão cercadas de água, mas é água salgada, que puxa água para fora da raiz por osmose. Para sobreviver, acumulam solutos em suas células (para manter o potencial hídrico baixo e continuar absorvendo água), excretam sal por glândulas especiais nas folhas ou acumulam sal em folhas velhas que depois caem. Manguezais são o exemplo clássico brasileiro: suas plantas filtram sal na raiz, excretam sal pelas folhas e vivem em solo pobre em oxigênio, com raízes respiratórias (pneumatóforos) que emergem da lama.
Como comparar na prova: diante de duas plantas descritas, pergunte-se: qual perde mais água? A de folha larga, fina, com muitos estômatos e cutícula fina é a higrófita; a de folha pequena, espinhosa, com cutícula grossa e estômatos afundados é a xerófita. Se a questão falar em “abrir estômatos à noite”, é CAM e ambiente seco. Se falar em “gutação frequente”, é ambiente úmido, com pressão de raiz ativa e transpiração baixa.
Tabelas comparativas
Xilema x Floema
| Característica | Xilema | Floema |
|---|---|---|
| Seiva conduzida | Seiva bruta: água + sais minerais | Seiva elaborada: açúcares, aminoácidos, hormônios |
| Sentido principal | Ascendente: raiz → folhas | Da fonte ao dreno: pode subir ou descer |
| Células condutoras | Mortas, com paredes lignificadas (traqueídes e elementos de vaso) | Vivas (células crivosas + células companheiras) |
| Mecanismo principal | Coesão-tensão, puxada pela transpiração (passivo) | Fluxo de pressão, com carregamento ativo de açúcar |
| Efeito do anelamento | Não é interrompido (fica mais interno) | É interrompido; açúcares acumulam-se acima do anel |
Transpiração estomática x Cuticular x Lenticelar
| Característica | Estomática | Cuticular | Lenticelar |
|---|---|---|---|
| Via de saída | Ostíolo dos estômatos | Cutícula da epiderme | Lenticelas do caule e da raiz |
| Proporção típica | 80% a 90% do total, com estômatos abertos | Pequena, mas contínua | Muito pequena, exceto sem folhas |
| Controle pela planta | Rápido: abre e fecha em minutos | Não regulável a curto prazo | Não regulável; lenticelas sempre abertas |
| Quando predomina | De dia, com luz e estômatos abertos | À noite, com estômatos fechados | No inverno, em árvores sem folhas |
| Fatores que aumentam | Luz, calor moderado, vento, ar seco | Cutícula fina, folha jovem | Caule lenhoso exposto, sem folhas |
Plantas de ambiente seco x Plantas de ambiente úmido
| Característica | Ambiente seco (xerófitas) | Ambiente úmido (higrófitas) |
|---|---|---|
| Folhas | Pequenas, espinhos ou enroladas; pouca superfície | Grandes, finas, com ponta gotejadora |
| Cutícula | Espessa, cerosa, impermeável | Fina, pouca cera |
| Estômatos | Poucos, em criptas; em CAM, abrem à noite | Numerosos, superficiais; na face superior em flutuantes |
| Armazenamento de água | Caule ou folhas suculentas | Pouco armazenamento; água abundante |
| Estratégia central | Economizar água a todo custo | Captar luz e eliminar excesso de água |
| Exemplos | Cacto, suculentas, plantas da caatinga | Plantas de mata úmida, aguapé, vitória-régia |
Para continuar estudando
Para fixar a fisiologia vegetal, vale revisitar a base: Introdução à Botânica, Ciclo reprodutivo dos vegetais, Briófitas e Pteridófitas, Gimnospermas, Morfologia vegetal: Flor, semente e fruto e Morfologia vegetal: Raiz, caule e folha — todas com URLs verificadas.
Mapa mental
- Fisiologia e transpiração vegetal
- Absorção
- Pelos absorventes da raiz aumentam a superfície de contato
- Água entra por osmose; sais entram por transporte ativo
- Endoderme e estria de Caspary controlam a entrada no xilema
- Transporte da seiva bruta (xilema)
- Pressão de raiz: empurra um pouco, funciona melhor à noite
- Capilaridade: ajuda em vasos finos, mas é limitada
- Coesão-tensão: principal mecanismo; transpiração puxa a coluna de água
- Coesão entre moléculas + adesão à parede sustentam a coluna
- Transporte da seiva elaborada (floema)
- Da fonte (folha) ao dreno (raiz, fruto, semente, gema)
- Fluxo de pressão: açúcar carregado ativamente, água entra por osmose
- Anelamento interrompe o floema e acumula açúcar acima do corte
- Transpiração
- Estomática: principal, regulável, pelos estômatos
- Cuticular: pequena, contínua, pela cutícula
- Lenticelar: pequena, pelas lenticelas do caule
- Estômatos
- Células-guarda túrgidas abrem; murchas fecham
- Abrem com: luz, CO₂ baixo, potássio entrando
- Fecham com: falta de água, ABA, CO₂ alto, noite
- Fatores: luz, temperatura, vento, umidade do ar, água no solo
- Gutação
- Água líquida por hidatódios, de madrugada, com solo úmido
- Prova da pressão de raiz; diferente do orvalho
- Triângulo da folha
- Fotossíntese produz glicose e O₂, consome CO₂ e água
- Respiração consome glicose e O₂, libera CO₂ e água
- Ponto de compensação: fotossíntese = respiração
- Dilema: abrir para captar CO₂ ou fechar para economizar água
- Adaptações
- Ambiente seco: espinhos, cutícula grossa, CAM, suculência
- Ambiente úmido: folhas grandes, cutícula fina, hidatódios
- Ambiente salino: excreção de sal, acúmulo de solutos, pneumatóforos
- Absorção
SAQ — Perguntas e respostas rápidas
1. Por onde a água entra na planta?
Principalmente pelos pelos absorventes da raiz, por osmose, atravessando o córtex até o xilema, com controle da endoderme.
2. O que é seiva bruta e o que é seiva elaborada?
Seiva bruta é água + sais minerais, conduzida pelo xilema, da raiz às folhas. Seiva elaborada é rica em açúcares, conduzida pelo floema, da folha aos drenos.
3. Qual é o principal mecanismo de subida da água em árvores altas?
A teoria da coesão-tensão: a transpiração puxa a coluna de água, sustentada pela coesão entre as moléculas e pela adesão à parede do vaso.
4. Por que a pressão de raiz não explica sozinha o transporte em árvores?
Porque ela é fraca, eleva a água poucos metros e funciona melhor quando a transpiração é baixa, como à noite.
5. Como o estômato abre e fecha?
As células-guarda abrem o ostíolo quando ficam túrgidas (água entra por osmose, após entrada de potássio) e o fecham quando murcham (potássio e água saem).
6. O que aumenta e o que diminui a transpiração?
Aumentam: luz, calor moderado, vento e ar seco. Diminuem: umidade alta, falta de luz, estômatos fechados e solo seco com produção de ABA.
7. Qual a diferença entre gutação e transpiração?
Gutação elimina água líquida por hidatódios, por pressão de raiz, com transpiração baixa. Transpiração elimina vapor, principalmente pelos estômatos.
8. Por que cactos abrem os estômatos à noite?
Porque são plantas CAM: captam CO₂ à noite, com ar fresco e úmido, armazenam-no como ácido málico e fotossintetizam de dia, com os estômatos fechados, economizando água.
Questões comentadas
As questões abaixo são originais, elaboradas no estilo do ENEM, com situações-problema, gráficos descritos e alternativas que testam os erros mais comuns. Leia o enunciado com calma, elimine as alternativas absurdas primeiro e só depois decida entre as plausíveis — essa é a estratégia que mais aprova.
Questão 1
Uma estudante colocou duas mudas idênticas de uma mesma espécie em vasos com solo úmido. Uma ficou em ambiente com ventilador ligado o dia todo; a outra, em ambiente sem vento, com as mesmas condições de luz e temperatura. Ao final de uma semana, a planta do ambiente com vento estava mais murcha, embora o solo dos dois vasos continuasse úmido. A melhor explicação para esse resultado é que o vento:
A) fechou os estômatos da planta, impedindo a fotossíntese e causando a murcha.
B) removeu a camada de ar úmido junto às folhas, aumentando a transpiração e a perda de água.
C) aumentou a pressão de raiz, empurrando água em excesso para as folhas.
D) impediu a absorção de sais minerais pela raiz, causando deficiência nutricional imediata.
E) resfriou as folhas, reduzindo a transpiração e provocando acúmulo de água nos tecidos.
Gabarito: B.
Comentário: O vento remove a camada limítrofe de ar úmido que fica parada junto à folha e a substitui por ar mais seco, aumentando o gradiente de vapor entre a folha e o ar e, portanto, a transpiração. Se a perda pelas folhas supera a reposição pela raiz, a planta murcha mesmo com solo úmido — exatamente o que o enunciado descreve. A alternativa A falha porque o vento, por si só, não fecha os estômatos; ao contrário, ele tende a aumentar a perda enquanto eles estão abertos. A alternativa C falha porque a pressão de raiz não é aumentada pelo vento e, mesmo que fosse, mais água chegando à folha não causaria murcha. A alternativa D falha porque a deficiência nutricional leva dias ou semanas para se manifestar e não explica murcha em uma semana com solo úmido e adubado da mesma forma. A alternativa E inverte o efeito: resfriar a folha tenderia a reduzir a transpiração, não a aumentá-la, e acúmulo de água não causa murcha, mas turgescência.
Questão 2
Um agricultor retirou um anel completo de casca do tronco de uma árvore jovem, sem atingir a parte interna e lenhosa do caule. Semanas depois, observou que a região do tronco acima do anel estava mais espessa e com acúmulo de substâncias orgânicas, enquanto as raízes começaram a definhar. Esse experimento demonstra que:
A) o xilema foi interrompido, impedindo a subida de água para as folhas.
B) o floema foi interrompido, impedindo a descida da seiva elaborada para as raízes.
C) a pressão de raiz foi anulada, impedindo a gutação nas folhas.
D) os estômatos foram fechados permanentemente, impedindo a transpiração.
E) a fotossíntese foi interrompida, pois a luz deixou de chegar às folhas.
Gabarito: B.
Comentário: A casca contém o floema, que conduz a seiva elaborada das folhas para as raízes. Ao retirar o anel, o fluxo descendente é interrompido: os açúcares acumulam-se acima do corte (por isso a região engrossa) e as raízes ficam sem alimento e definham. A alternativa A falha porque o xilema fica na parte interna, lenhosa, que não foi atingida — a água continua subindo normalmente. A alternativa C falha porque a pressão de raiz é gerada na raiz e não depende da casca do tronco; além disso, a gutação não é o fenômeno central do experimento. A alternativa D falha porque os estômatos ficam nas folhas, longe do anel, e não são afetados diretamente pelo corte. A alternativa E falha porque a fotossíntese continua acontecendo nas folhas acima do anel, que recebem luz e água normalmente; o problema é o destino do produto, não a sua produção.
Questão 3
De madrugada, um jardineiro observou gotas de água nas bordas das folhas de uma planta, embora não tivesse chovido e o solo estivesse úmido. Ao longo do dia, com sol e vento, as gotas desapareceram e as folhas passaram a perder vapor. A sequência observada corresponde, respectivamente, a:
A) orvalho e fotossíntese.
B) transpiração cuticular e gutação.
C) gutação e transpiração estomática.
D) respiração e fermentação.
E) capilaridade e pressão de raiz.
Gabarito: C.
Comentário: De madrugada, com ar saturado, estômatos fechados e solo úmido, a pressão de raiz empurra água líquida para fora pelos hidatódios: é a gutação, visível nas bordas das folhas. De dia, com luz e vento, os estômatos abrem e a planta passa a perder vapor, sobretudo pela via estomática: é a transpiração. A alternativa A falha porque orvalho é condensação do vapor atmosférico sobre superfícies frias, não água expelida pela planta, e fotossíntese não é uma forma de perda de água. A alternativa B inverte a ordem e confunde os fenômenos: a perda noturna em forma líquida não é cuticular (que é vapor, pela cutícula). A alternativa D falha porque respiração e fermentação não descrevem eliminação de água líquida e vapor nas condições descritas. A alternativa E falha porque capilaridade e pressão de raiz são mecanismos de transporte, não os fenômenos de eliminação observados — embora a pressão de raiz seja a causa da gutação, ela não é a resposta completa para a primeira parte, e a segunda parte não é pressão de raiz.
Questão 4
Um gráfico mostra a taxa de transpiração de uma planta ao longo de um dia quente e seco: ela sobe pela manhã, atinge um pico no fim da manhã, cai acentuadamente ao meio-dia e volta a subir um pouco à tarde, antes de cair à noite. A queda ao meio-dia é mais bem explicada por:
A) aumento da fotossíntese, que consome toda a água da folha.
B) fechamento dos estômatos como proteção contra a desidratação, mediado pelo ácido abscísico.
C) aumento da umidade do ar ao meio-dia, que sempre ocorre em dias quentes.
D) interrupção da pressão de raiz, que só funciona à noite.
E) abertura total dos estômatos, que esgota o vapor disponível na folha.
Gabarito: B.
Comentário: Ao meio-dia, com calor extremo e ar seco, a perda de água ameaça desidratar a planta. Como defesa, ela produz ácido abscísico (ABA), que sinaliza o fechamento dos estômatos, reduzindo a transpiração mesmo com sol forte — o chamado fechamento do meio-dia. A alternativa A falha porque a fotossíntese consome pouquíssima água em comparação com a transpiração e, além disso, com os estômatos fechados a fotossíntese diminui, não aumenta. A alternativa C falha porque, em dias quentes e secos, a umidade relativa do ar ao meio-dia costuma cair, não aumentar. A alternativa D falha porque a pressão de raiz não é o motor da transpiração diurna; sua interrupção não explica uma queda brusca ao meio-dia, e ela não “só funciona à noite”. A alternativa E é contraditória: se os estômatos estivessem totalmente abertos, a transpiração aumentaria, não cairia, e não há “esgotamento do vapor” que impeça a saída enquanto houver água na folha.
Questão 5
Duas espécies foram cultivadas nas mesmas condições de luz, temperatura e rega, mas em solos diferentes: a espécie X, em solo normal, cresceu normalmente; a espécie Y, em solo com excesso de sal, murchou rapidamente, embora o solo estivesse úmido. A murcha da espécie Y é mais bem explicada por:
A) excesso de fotossíntese, que consumiu toda a água absorvida.
B) inversão do gradiente osmótico: o solo ficou mais concentrado que as células da raiz, e a água saiu da planta por osmose.
C) fechamento permanente das lenticelas, que impediu a respiração do caule.
D) aumento da capilaridade no xilema, que transportou água rápido demais para as folhas.
E) falta de gás carbônico no solo, que impediu a respiração das raízes.
Gabarito: B.
Comentário: Em solo normal, a solução do solo é menos concentrada que o interior das células da raiz, então a água entra por osmose. Com excesso de sal, o solo fica hipertônico em relação à raiz: a água passa a sair das células por osmose, a planta perde turgescência e murcha, mesmo com solo úmido — é o mesmo princípio do excesso de adubo “queimando” a planta. A alternativa A falha porque a fotossíntese não consome água nessa proporção e não é afetada diretamente pelo sal do solo em curto prazo. A alternativa C falha porque as lenticelas são vias de troca gasosa do caule, não a porta de entrada de água, e seu fechamento não causaria murcha rápida por osmose. A alternativa D falha porque mais capilaridade significaria mais água subindo, não murcha, e a capilaridade não é alterada pelo sal dessa forma. A alternativa E falha porque as raízes respiram oxigênio, não gás carbônico, e a falta de oxigênio (em solo encharcado) é um problema diferente, que prejudica a absorção de sais, não inverte a osmose da água.
Questão 6
Um pesquisador comparou uma planta de deserto e uma planta de mata úmida. Observou que a planta de deserto tinha folhas reduzidas a espinhos, cutícula espessa e estômatos que se abriam à noite, enquanto a planta de mata tinha folhas largas, cutícula fina e estômatos numerosos na face inferior. Essas características indicam, respectivamente, estratégias para:
A) aumentar a transpiração e aumentar a captação de luz.
B) economizar água e captar luz em ambiente úmido, onde a água não falta.
C) aumentar a gutação e reduzir a fotossíntese.
D) armazenar sal e eliminar excesso de água.
E) acelerar a respiração e reduzir a pressão de raiz.
Gabarito: B.
Comentário: A planta de deserto apresenta o conjunto clássico das xerófitas e do metabolismo CAM: reduzir a superfície transpirante, impermeabilizar a folha e abrir os estômatos à noite, quando o ar está fresco, para economizar água. A planta de mata úmida, onde a água é abundante mas a luz no interior da floresta é escassa, investe em folhas largas e finas para captar luz, sem precisar economizar água — por isso a cutícula fina não é problema. A alternativa A falha porque a planta de deserto quer exatamente o contrário: reduzir, não aumentar, a transpiração. A alternativa C falha porque gutação é típica de ambientes úmidos com pressão de raiz, não a estratégia central da planta de deserto, e nenhuma das duas quer reduzir a fotossíntese como objetivo. A alternativa D descreve halófitas, plantas de ambiente salino, não o par deserto/mata úmida do enunciado. A alternativa E falha porque respiração acelerada e pressão de raiz reduzida não resumem as adaptações descritas, que são sobre balanço hídrico e captação de luz.
Dica do professor
Se você só tiver dez minutos para revisar este tema antes da prova, decore esta frase e saiba explicá-la: “A água sobe puxada pela transpiração, não empurrada pela raiz”. A partir dela, você resolve questões sobre coesão-tensão, sobre por que a transpiração é maior de dia, sobre por que o vento aumenta a perda e sobre por que a planta fecha os estômatos ao meio-dia. Depois, decore o segundo par: “Xilema sobe com seiva bruta; floema distribui seiva elaborada da fonte ao dreno”. Com esses dois pilares, mais a regra de que célula-guarda túrgida abre e murcha fecha, você já tem o esqueleto de quase toda a fisiologia vegetal cobrada no ENEM. Nos minutos restantes, treine um gráfico de transpiração ao longo do dia e uma comparação entre cacto e planta de mata úmida — são os dois formatos que mais se repetem.
Outra dica prática: ao ler uma questão, sublinhe mentalmente as palavras que indicam o mecanismo — “à noite”, “solo úmido”, “gotas nas bordas” apontam para pressão de raiz e gutação; “árvore alta”, “de dia”, “vento” apontam para coesão-tensão e transpiração estomática; “anel de casca” aponta para floema; “solo salgado” aponta para osmose invertida. As bancas deixam pistas no enunciado; aprender a lê-las vale mais do que decorar definições soltas.
Atenção/cuidado
Cuidado com os erros mais comuns neste tema. Primeiro: não confunda transpiração com gutação — uma é vapor, a outra é líquido, e elas acontecem em condições opostas. Segundo: não diga que a capilaridade ou a pressão de raiz explicam sozinhas a subida da água em árvores altas; elas ajudam, mas a explicação principal é a coesão-tensão. Terceiro: não confunda xilema com floema, nem seiva bruta com seiva elaborada — o anelamento interrompe o floema, não o xilema. Quarto: não pense que estômato aberto significa sempre transpiração alta — se o ar estiver saturado de umidade, a perda é pequena mesmo com o poro aberto, porque o gradiente de vapor é pequeno. Quinto: não confunda orvalho com gutação — orvalho é condensação externa; gutação é eliminação interna. Sexto: lembre que a planta não “escolhe” perder água por prazer; a transpiração é o custo de abrir os estômatos para captar gás carbônico. Guardar essas distinções evita a maioria das pegadinhas.
Conexão com outras áreas
Este tema conecta Biologia com Física, Química, Geografia e até Agricultura. Com a Física, pela difusão, osmose, capilaridade, tensão superficial e pontes de hidrogênio — a coesão-tensão é, no fundo, física aplicada à planta. Com a Química, pelas soluções, concentrações, potencial hídrico e pelo papel dos íons potássio, nitrato, fosfato e magnésio na nutrição vegetal. Com a Geografia e a Ecologia, pelos biomas: caatinga, cerrado, mata atlântica e manguezais selecionaram plantas com fisiologias diferentes, e entender transpiração ajuda a entender por que cada bioma tem a vegetação que tem. Com a Agricultura, pela irrigação, adubação, transplante de mudas, cultivo em estufas e manejo de salinidade do solo — tudo isso é fisiologia vegetal aplicada. E com as mudanças climáticas, pelo efeito do aumento do CO₂ atmosférico sobre a abertura estomática e pela maior frequência de secas, que testam ao limite o dilema entre captar carbono e economizar água. Quando você estuda transpiração, está estudando, ao mesmo tempo, o clima, o solo e a produção de alimentos.
Para continuar, revise a matéria sobre Fotossíntese, explore a lista de Biologia e acompanhe os temas de ENEM no Clique Vestibular. A fisiologia vegetal rende mais quando estudada em conjunto: água, luz, gás carbônico e nutrientes formam um único sistema, e a prova cobra justamente essa visão integrada.