
Direto ao assunto
- Resumo rápido
- O que é ligação gênica?
- Crossing-over: a troca que cria variedade
- Frequência de recombinação: a fórmula que cai em prova
- A unidade de mapa: o centimorgan (cM)
- Construção de um mapa de 3 genes
- Interferência e coincidência: quando um crossing-over atrapalha o outro
- Como resolver qualquer questão de mapa gênico
- Mapa mental
- SAQ — Perguntas e respostas curtas
- Questões comentadas
- Dica do professor
- Atenção/cuidado
- Conexão com outras áreas
- Incidência
Resumo rápido
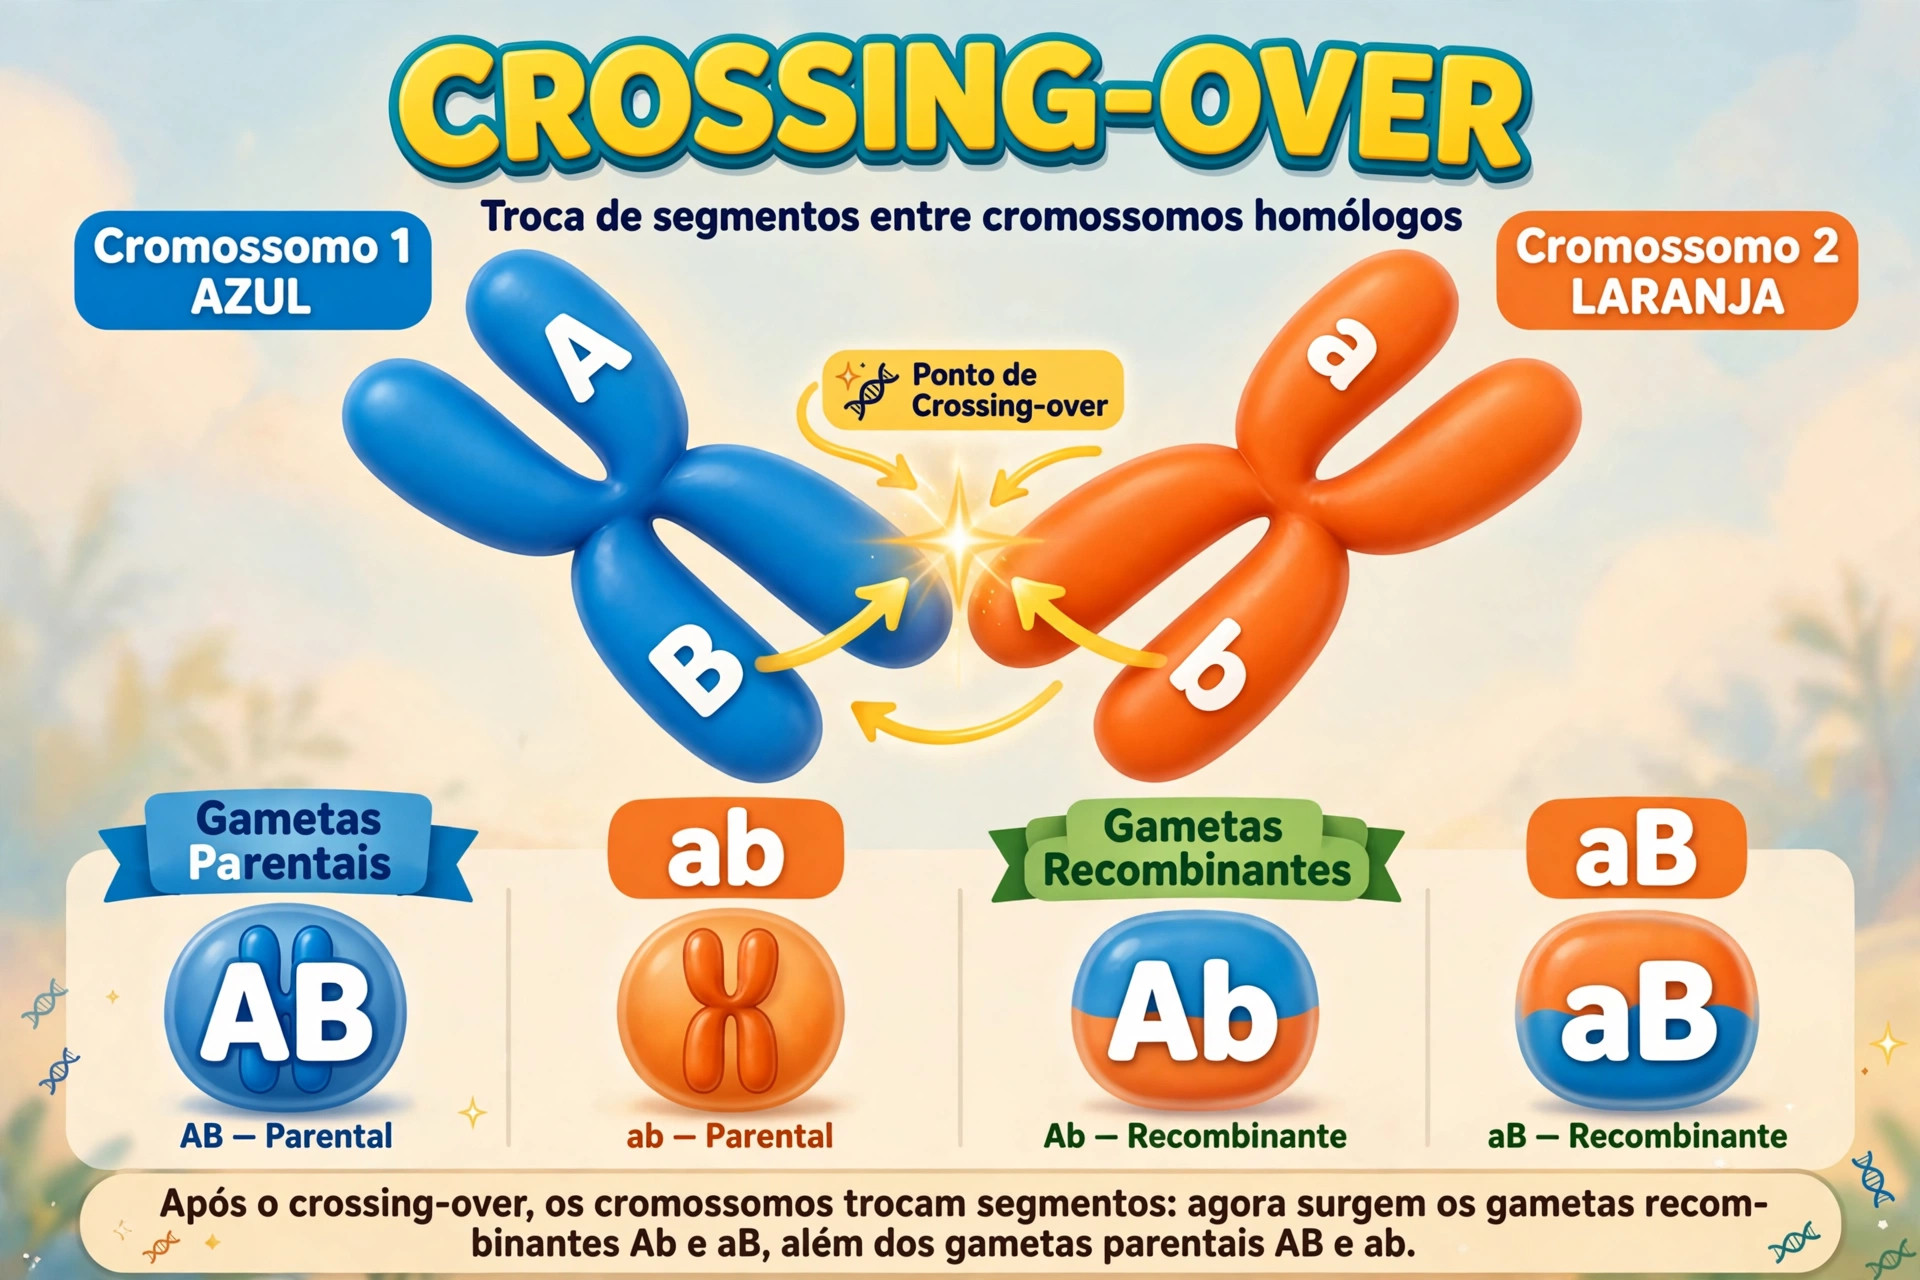
Quando dois genes estão no mesmo cromossomo, eles não se separam de forma independente: eles tendem a ser herdados juntos. Isso se chama ligação gênica (ou linkage). O que quebra essa ligação, de vez em quando, é o crossing-over (permutação): durante a meiose, os cromossomos homólogos trocam trechos entre si e formam combinações novas de genes. Os gametas que mantêm a combinação original são os gametas parentais; os que trazem a combinação nova são os gametas recombinantes.
A frequência de recombinação mede quantos gametas recombinantes aparecem em relação ao total. Ela é a chave desta matéria: 1% de recombinação equivale a 1 centimorgan (cM), a unidade de distância do mapa gênico. Quanto maior a distância entre dois genes no cromossomo, maior a chance de crossing-over entre eles — e maior a frequência de recombinação. É um tema 🔥 Quente no ENEM e nos vestibulares, porque quase sempre aparece como um cálculo: a questão dá os números dos descendentes e pede a frequência, a distância ou a ordem dos genes no mapa.
Em resumo: genes ligados formam poucos gametas recombinantes; genes distantes formam muitos; genes em cromossomos diferentes segregam de forma independente, como na segunda lei de Mendel. Se você decorar só uma fórmula, que seja esta: frequência de recombinação = (número de recombinantes ÷ total de descendentes) × 100. O resto é interpretação.
O que é ligação gênica?
Na segunda lei de Mendel, os genes se separam de forma independente porque estão em cromossomos diferentes. Mas um cromossomo carrega muitos genes ao mesmo tempo — e genes que ficam no mesmo cromossomo viajam juntos na meiose, a menos que o crossing-over os separe. O geneticista Thomas Hunt Morgan percebeu isso estudando a mosca-das-frutas Drosophila melanogaster: algumas características que deveriam segregar de forma independente apareciam juntas nos descendentes com frequência muito maior do que o esperado. A explicação era simples: os genes responsáveis estavam ligados, no mesmo cromossomo.
Pense em dois genes, A e B, em um mesmo cromossomo. Um dos pais tem, em um cromossomo, os alelos A e B juntos, e no cromossomo homólogo tem a e b juntos. Sem crossing-over, esse indivíduo só formaria dois tipos de gametas: AB e ab. São os gametas parentais, porque repetem exatamente as combinações que vieram dos pais. Com crossing-over entre os dois genes, surgem também os gametas Ab e aB, que misturam os alelos dos dois cromossomos. São os gametas recombinantes. O detalhe que decide a questão é a proporção: em genes ligados, os gametas parentais são sempre mais frequentes que os recombinantes.
Isso também explica por que a ligação gênica não é absoluta. Os genes não estão “colados” para sempre: o crossing-over pode acontecer em qualquer ponto entre eles. Se os genes estão pertinho um do outro, é raro o crossing-over acontecer justamente entre eles, e os recombinantes são poucos. Se estão longe, a chance de uma troca acontecer no espaço entre eles é maior, e os recombinantes são mais numerosos. É exatamente essa relação — distância maior, recombinação maior — que permite desenhar o mapa gênico.
Crossing-over: a troca que cria variedade
O crossing-over acontece na prófase I da meiose, quando os cromossomos homólogos estão pareados. Nesse momento, cromátides não irmãs trocam trechos correspondentes. O resultado é a formação de cromossomos “misturados”, com parte do material de um dos pais e parte do outro. É uma das grandes fontes de variabilidade genética: sem ele, cada cromossomo passaria inteiro de geração em geração, e a variedade de combinações seria muito menor.
Um erro comum é confundir crossing-over com segregação independente. São coisas diferentes. A segregação independente embaralha cromossomos inteiros: cada gameta recebe um cromossomo de cada par, ao acaso. O crossing-over embaralha o que está dentro do cromossomo: ele troca trechos entre os homólogos. Outro erro comum é achar que o crossing-over cria genes novos. Ele não cria alelos novos — apenas rearranja os alelos que já existem, em combinações novas. Alelos novos surgem por mutação, não por crossing-over.
Na prática das provas, o crossing-over aparece quase sempre junto com o cruzamento-teste: um indivíduo duplo-heterozigoto (AB/ab) é cruzado com um duplo-recessivo (ab/ab). Como o recessivo só contribui com gametas ab, cada fenótipo dos descendentes revela diretamente o gameta que veio do heterozigoto. Por isso, contar os descendentes é contar os gametas — e é dessa contagem que sai a frequência de recombinação.
Gametas parentais e gametas recombinantes
Considere um indivíduo AB/ab, em que A e B vieram juntos de um dos pais e a e b vieram juntos do outro. Os quatro tipos de gametas possíveis são:
| Tipo de gameta | Combinação | Como se forma | Frequência esperada |
|---|---|---|---|
| Parental | AB | Sem crossing-over entre A e B | Alta |
| Parental | ab | Sem crossing-over entre A e B | Alta |
| Recombinante | Ab | Com crossing-over entre A e B | Baixa |
| Recombinante | aB | Com crossing-over entre A e B | Baixa |
Repare em um detalhe importante: os dois gametas parentais aparecem em proporções parecidas entre si, e os dois recombinantes também. Se em uma questão os números de AB e ab forem muito diferentes, ou os de Ab e aB forem muito diferentes, desconfie: pode haver outro fenômeno envolvido, como genes letais ou seleção, ou você pode ter identificado os parentais de forma errada. Em genes ligados, a regra de ouro é: os dois tipos mais numerosos são os parentais; os dois menos numerosos são os recombinantes.
Frequência de recombinação: a fórmula que cai em prova
A frequência de recombinação (FR) é a porcentagem de gametas recombinantes em relação ao total de gametas — ou, no cruzamento-teste, a porcentagem de descendentes recombinantes em relação ao total de descendentes. A fórmula é:
FR = (número de recombinantes ÷ número total de descendentes) × 100
Vamos aplicar passo a passo, com números exatos. Um indivíduo AB/ab foi cruzado com um indivíduo ab/ab, e foram observados 1.000 descendentes:
| Descendente | Quantidade | Tipo |
|---|---|---|
| AB/ab | 400 | Parental |
| ab/ab | 400 | Parental |
| Ab/ab | 100 | Recombinante |
| aB/ab | 100 | Recombinante |
| Total | 1.000 | — |
Passo 1: some os recombinantes: 100 + 100 = 200. Passo 2: divida pelo total: 200 ÷ 1.000 = 0,20. Passo 3: multiplique por 100: 0,20 × 100 = 20%. Portanto, a frequência de recombinação é 20% — e, como veremos a seguir, a distância entre os genes A e B é de 20 cM. Note também que os parentais somam 800, ou seja, 80% dos descendentes: bem mais que os 20% de recombinantes, confirmando que os genes estão ligados.
E se a frequência fosse 50%? Aí não dá para falar em ligação. Quando dois genes estão em cromossomos diferentes, cada tipo de gameta aparece com 25% de frequência, e os recombinantes somam 50%. Ou seja: frequência de recombinação próxima de 50% indica segregação independente, não ligação. Frequência bem abaixo de 50% indica ligação. E frequência de 0% significaria ligação total, sem nenhum crossing-over entre os genes — algo raro na prática, porque o crossing-over quase sempre acontece em alguma célula.
A unidade de mapa: o centimorgan (cM)
Alfred Sturtevant, aluno de Morgan, teve a ideia que transformou esses números em mapa: usar a frequência de recombinação como medida de distância. Por definição, 1% de recombinação = 1 centimorgan (cM), também chamado de unidade de mapa (u.m.). Assim, se a frequência de recombinação entre A e B é 20%, a distância entre eles é 20 cM. Se é 5%, a distância é 5 cM. Simples assim — a prova raramente pede mais do que essa conversão.
| Frequência de recombinação | Distância no mapa | Interpretação |
|---|---|---|
| 5% | 5 cM | Genes bem próximos; crossing-over raro entre eles |
| 20% | 20 cM | Genes a distância média; recombinantes visíveis, mas minoria |
| 40% | 40 cM | Genes distantes no mesmo cromossomo; muitos recombinantes |
| 50% | Não indica ligação | Genes em cromossomos diferentes ou tão distantes que se comportam como independentes |
Um cuidado: o centimorgan não é uma distância física em centímetros. É uma distância genética, medida pela probabilidade de crossing-over. Dois genes a 20 cM de distância não estão a “20 centímetros” um do outro no cromossomo — estão separados por uma região em que o crossing-over acontece em 20% das meioses. Para saber a distância física de verdade, em pares de bases, seria preciso sequenciar o DNA. No mapa genético, o que importa é a ordem dos genes e a distância relativa entre eles.
Também vale lembrar: a frequência de recombinação tem um teto prático de 50%. Mesmo que dois genes estejam nas pontas opostas de um cromossomo enorme, a proporção de recombinantes não passa de 50%, porque, com crossing-over duplo e múltiplas trocas, metade dos produtos acaba voltando à combinação parental. É por isso que genes muito distantes no mesmo cromossomo podem parecer independentes nos cálculos — e é por isso que, para mapear cromossomos inteiros, os geneticistas usam genes intermediários, como pontos de referência no caminho.
Construção de um mapa de 3 genes
Para montar um mapa com três genes, o raciocínio é o mesmo, aplicado aos pares. Primeiro, calculam-se as três distâncias dois a dois. Depois, descobre-se qual gene está no meio: o gene do meio é aquele que faz a maior distância ser a soma das duas menores. Vamos ao exemplo clássico, com valores exatos.
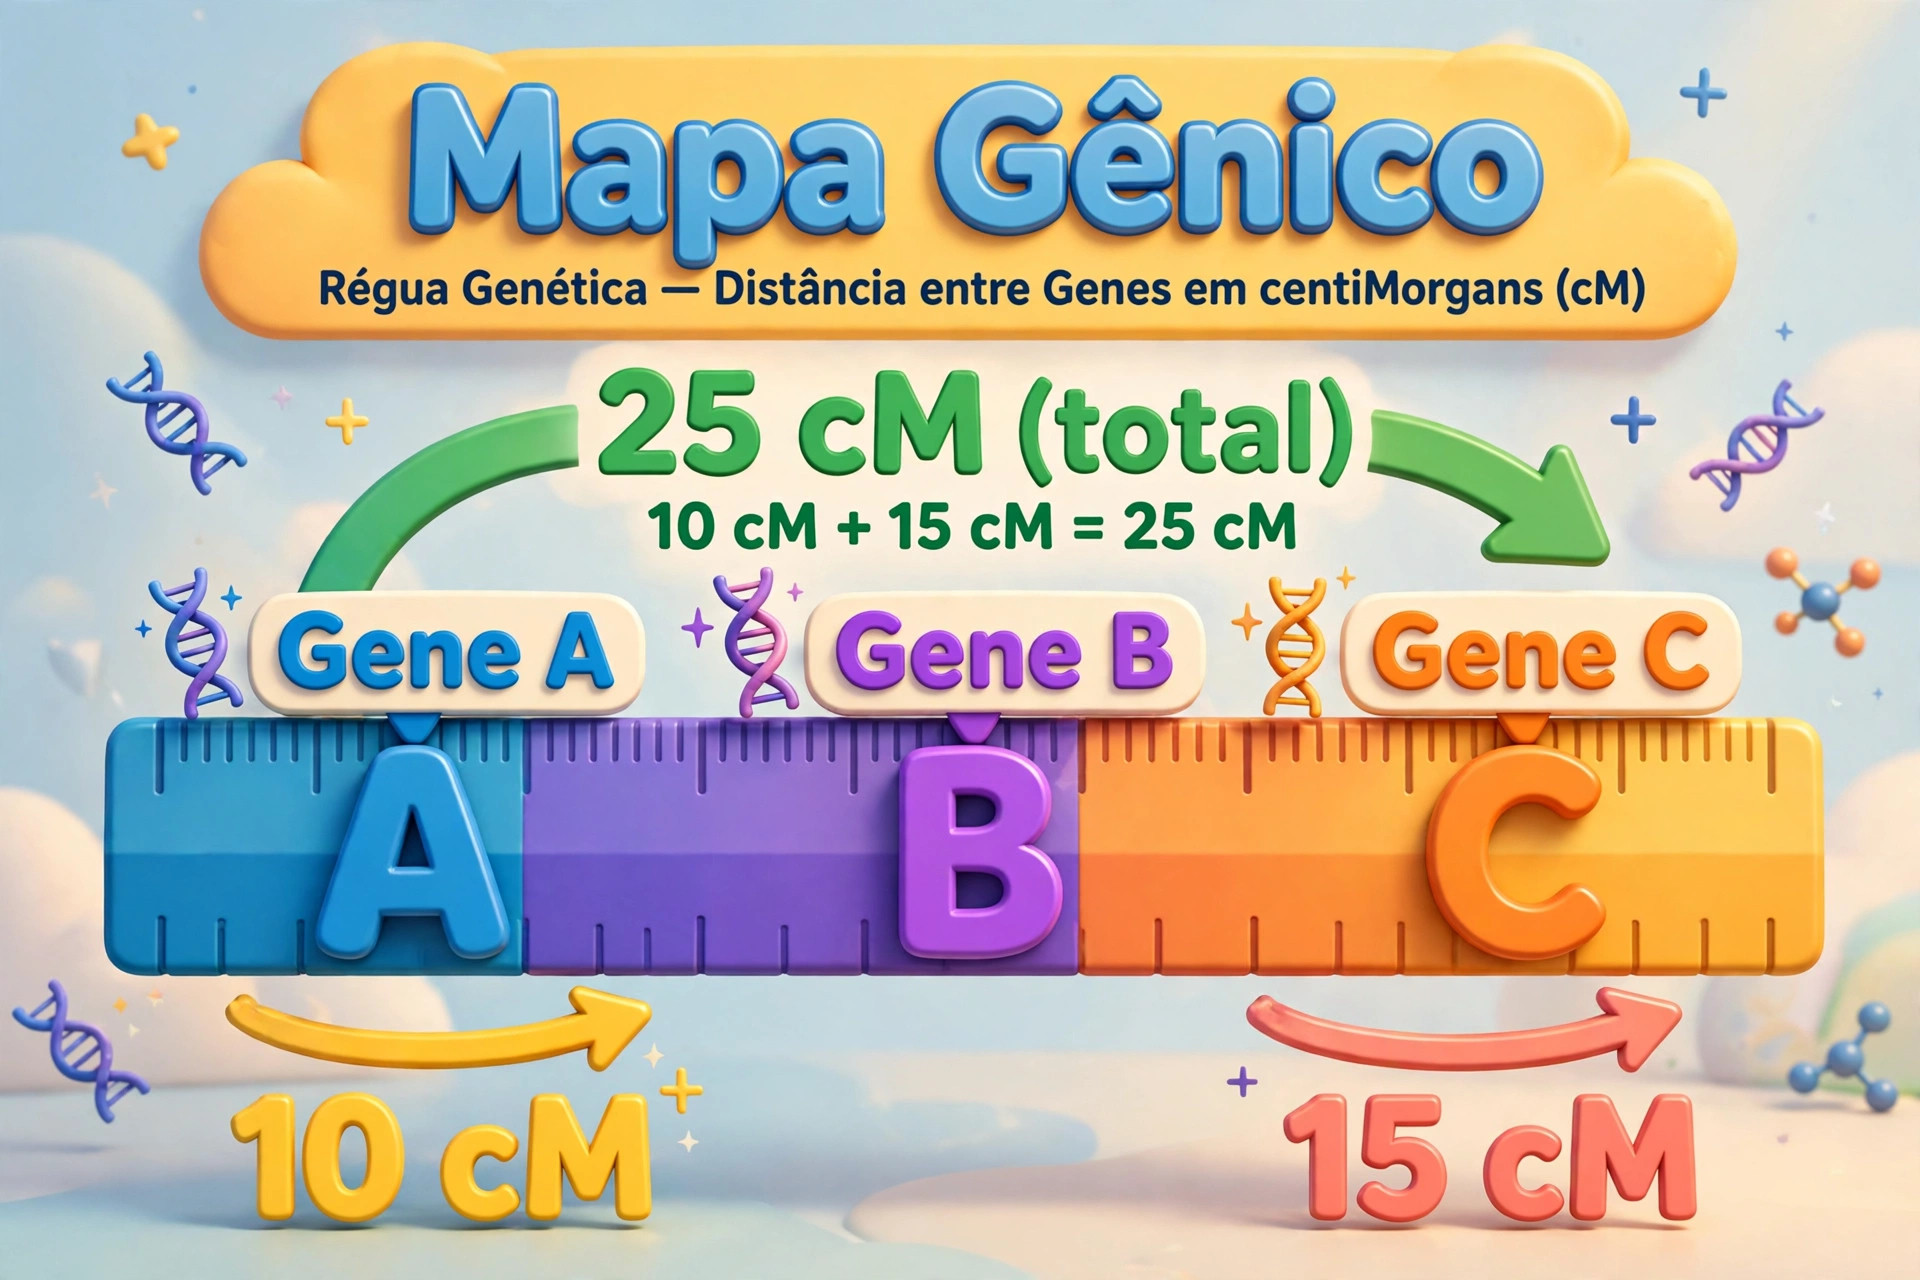
Suponha que as frequências de recombinação medidas foram: entre A e B, 10%; entre B e C, 15%; entre A e C, 25%. Convertendo para centimorgans, temos:
| Par de genes | Frequência de recombinação | Distância |
|---|---|---|
| A – B | 10% | 10 cM |
| B – C | 15% | 15 cM |
| A – C | 25% | 25 cM |
Agora, o teste da soma: 10 cM + 15 cM = 25 cM. A soma das duas menores distâncias é exatamente igual à maior distância. Isso só acontece se B estiver entre A e C. Portanto, a ordem é A — B — C, com A a 10 cM de B, B a 15 cM de C e A a 25 cM de C. O mapa fica assim:
A ——— 10 cM ——— B ——— 15 cM ——— C (distância total A–C = 25 cM)
Se, em vez disso, as distâncias fossem A–B = 10 cM, A–C = 15 cM e B–C = 25 cM, o gene do meio seria A, porque 10 + 15 = 25, e a ordem seria B — A — C. O truque é sempre o mesmo: some as duas menores; se o resultado for a maior, o gene que aparece nas duas menores é o do meio. Se a soma das duas menores for um pouco maior que a maior distância medida, a diferença geralmente se deve ao crossing-over duplo, que “esconde” parte das recombinações — e aí entra o próximo tópico.
Na prova, o mapa de três genes costuma vir de um cruzamento com um triplo-heterozigoto. O procedimento é: (1) identifique os parentais, que são os dois tipos mais numerosos; (2) identifique os duplos recombinantes, que são os dois tipos menos numerosos — eles resultam de dois crossing-over e revelam o gene do meio, porque é o gene do meio que troca de cromossomo no crossing-over duplo; (3) calcule as distâncias somando os recombinantes simples e os duplos de cada intervalo. Com calma, passo a passo, é uma questão longa, mas totalmente mecânica.
Interferência e coincidência: quando um crossing-over atrapalha o outro
Quando dois crossing-over acontecem perto um do outro, o primeiro pode dificultar o segundo. Esse fenômeno se chama interferência. Para medi-la, os geneticistas comparam o número de crossing-over duplos observado com o número esperado se os dois eventos fossem independentes. A razão entre eles é a coincidência:
Coincidência = número de duplos recombinantes observados ÷ número de duplos recombinantes esperados
Interferência = 1 − coincidência
Vamos ao cálculo, com os mesmos intervalos do exemplo anterior: entre A e B, a frequência é 10% (0,10); entre B e C, é 15% (0,15). Se os dois crossing-over fossem independentes, a probabilidade de ambos acontecerem na mesma meiose seria 0,10 × 0,15 = 0,015, ou seja, 1,5%. Em 1.000 descendentes, o número esperado de duplos recombinantes seria 0,015 × 1.000 = 15. Suponha que foram observados apenas 12 duplos recombinantes:
| Passo | Cálculo | Resultado |
|---|---|---|
| Frequência esperada de duplo crossing-over | 0,10 × 0,15 | 0,015 (1,5%) |
| Duplos recombinantes esperados em 1.000 descendentes | 0,015 × 1.000 | 15 |
| Coincidência | 12 ÷ 15 | 0,8 |
| Interferência | 1 − 0,8 | 0,2 |
Interpretação: a coincidência de 0,8 significa que aconteceram 80% dos duplos crossing-over esperados; a interferência de 0,2 significa que o primeiro crossing-over reduziu em 20% a chance do segundo. Se a interferência fosse 1 (coincidência zero), nenhum duplo crossing-over aconteceria: um crossing-over impediria completamente outro por perto. Se a interferência fosse 0 (coincidência 1), os dois eventos seriam totalmente independentes. Em prova, o mais cobrado é justamente esse raciocínio: interferência alta significa que os crossing-over se atrapalham; interferência baixa, que quase não se atrapalham.
Por que isso importa para o mapa? Porque o crossing-over duplo entre dois genes distantes pode devolver os alelos à combinação parental, “escondendo” a recombinação. Sem corrigir esse efeito, a distância medida entre genes distantes fica menor do que a real. Por isso, em mapas mais precisos, a distância entre os extremos é calculada somando os intervalos menores — que sofrem menos com o crossing-over duplo — em vez de usar a medida direta entre os extremos.
Como resolver qualquer questão de mapa gênico
Antes de ir para as questões, guarde este roteiro. Ele funciona para quase todas as questões de ligação gênica do ENEM e dos vestibulares:
- Identifique os gametas parentais: são os dois tipos mais numerosos nos descendentes do cruzamento-teste.
- Identifique os gametas recombinantes: são os dois tipos menos numerosos.
- Some os recombinantes, divida pelo total e multiplique por 100: essa é a frequência de recombinação.
- Converta: 1% = 1 cM. A frequência já é a distância.
- Para três genes, some as duas menores distâncias: se der a maior, o gene do meio é o que aparece nas duas menores.
- Para interferência: calcule os duplos esperados multiplicando as frequências dos dois intervalos; coincidência = observados ÷ esperados; interferência = 1 − coincidência.
- Desconfie se a frequência passar de 50%: nesse caso, não há evidência de ligação — os genes segregam de forma independente.
Se quiser revisar a base molecular antes de treinar, vale voltar à matéria de Carboidratos para relembrar como o conteúdo se organiza na sala de estudo e, principalmente, à categoria de Biologia, onde estão as matérias de Genética.
Continue estudando: revise os fundamentos na categoria de Biologia, treine outros temas na sala de estudo, confira o que mais cai no ENEM e nos vestibulares.
Mapa mental
- Ligação gênica
- Genes no mesmo cromossomo tendem a ser herdados juntos
- Contraria a segregação independente da segunda lei de Mendel
- Descoberta por Morgan, com a mosca Drosophila
- Crossing-over (permutação)
- Troca de trechos entre cromátides não irmãs, na prófase I da meiose
- Não cria alelos novos; cria combinações novas de alelos
- É fonte de variabilidade genética
- Gametas
- Parentais (AB e ab): mais numerosos, sem crossing-over entre os genes
- Recombinantes (Ab e aB): menos numerosos, com crossing-over entre os genes
- Frequência de recombinação
- FR = (recombinantes ÷ total) × 100
- Exemplo: 200 recombinantes em 1.000 descendentes = 20%
- Perto de 50% = segregação independente; bem abaixo de 50% = ligação
- Mapa gênico e centimorgan
- 1% de recombinação = 1 cM
- Exemplo: A — 10 cM — B — 15 cM — C; A–C = 25 cM
- Gene do meio: aparece nas duas menores distâncias, cuja soma é a maior
- Interferência e coincidência
- Coincidência = duplos observados ÷ duplos esperados
- Interferência = 1 − coincidência
- Exemplo: 12 ÷ 15 = 0,8 de coincidência; interferência = 0,2
SAQ — Perguntas e respostas curtas
- O que é ligação gênica? É a tendência de genes localizados no mesmo cromossomo serem herdados juntos, em vez de segregarem de forma independente.
- O que é crossing-over? É a troca de trechos entre cromátides não irmãs de cromossomos homólogos, durante a prófase I da meiose.
- Qual é a diferença entre gameta parental e gameta recombinante? O parental mantém a combinação de alelos herdada dos pais; o recombinante traz uma combinação nova, formada após o crossing-over.
- Como se calcula a frequência de recombinação? Dividindo o número de descendentes recombinantes pelo total de descendentes e multiplicando por 100.
- O que é 1 centimorgan (cM)? É a unidade de distância do mapa gênico: 1 cM corresponde a 1% de frequência de recombinação entre dois genes.
- Como descobrir o gene do meio em um mapa de três genes? Somando as duas menores distâncias: se a soma for igual à maior distância, o gene do meio é o que aparece nas duas menores.
- O que significa uma interferência de 0,2? Significa que um crossing-over reduziu em 20% a chance de outro crossing-over acontecer por perto; a coincidência, nesse caso, é 0,8.
Questões comentadas
Questão 1
Em um cruzamento-teste, um indivíduo duplo-heterozigoto foi cruzado com um duplo-recessivo e gerou 800 descendentes: 320 com um fenótipo, 320 com outro, 80 com um terceiro e 80 com um quarto. Sabendo que os dois fenótipos mais numerosos correspondem aos gametas parentais, qual é a frequência de recombinação entre os dois genes?
Gabarito: 20%. Os recombinantes são os dois tipos menos numerosos: 80 + 80 = 160. Dividindo pelo total, 160 ÷ 800 = 0,20, ou seja, 20%. Como a frequência está bem abaixo de 50%, os genes estão ligados, a uma distância de 20 cM um do outro. O erro mais comum aqui é somar os parentais em vez dos recombinantes — o que daria 80%, um valor impossível para frequência de recombinação.
Questão 2
Dois genes estão ligados a uma distância de 30 cM um do outro. Em um cruzamento-teste com 2.000 descendentes, quantos descendentes recombinantes são esperados, aproximadamente?
Gabarito: 600 descendentes. Uma distância de 30 cM corresponde a uma frequência de recombinação de 30%. Aplicando aos 2.000 descendentes: 0,30 × 2.000 = 600. Os outros 1.400 descendentes, ou seja, 70%, devem ser parentais — 700 de cada tipo parental, aproximadamente. Se a questão pedisse cada tipo recombinante separadamente, seriam 300 de cada, pois os dois tipos recombinantes aparecem em proporções parecidas.
Questão 3
As distâncias entre três genes de um mesmo cromossomo foram medidas: entre P e Q, 5 cM; entre Q e R, 12 cM; entre P e R, 17 cM. Qual é a ordem correta dos genes no cromossomo?
Gabarito: P — Q — R. A maior distância é P–R, com 17 cM. Somando as duas menores: 5 cM + 12 cM = 17 cM. A soma é exatamente igual à maior distância, e o gene que aparece nas duas menores é Q. Portanto, Q está no meio, e a ordem é P — Q — R. Quem escolhe o gene da maior distância como “do meio” erra: o gene do meio é o que se repete nas duas distâncias menores.
Questão 4
Um pesquisador cruzou um indivíduo duplo-heterozigoto com um duplo-recessivo e obteve os quatro tipos de descendentes em proporções praticamente iguais, cerca de 25% cada. O que esse resultado indica sobre os dois genes estudados?
Gabarito: os genes não estão ligados (segregam de forma independente). Quando os quatro tipos aparecem com 25% cada, os recombinantes somam 50% — exatamente o esperado para genes em cromossomos diferentes, segundo a segunda lei de Mendel. Nesse caso, não há como montar um mapa de ligação entre eles, pois a frequência de recombinação de 50% não indica distância: ela é o teto da recombinação, e não uma medida de ligação.
Questão 5
Em um cromossomo, a distância entre os genes X e Y é de 10 cM, e entre Y e Z é de 20 cM. Em 1.000 descendentes de um cruzamento-teste, foram observados apenas 10 duplos recombinantes. Calcule a coincidência e a interferência.
Gabarito: coincidência 0,5 e interferência 0,5. Primeiro, os duplos esperados: 0,10 × 0,20 = 0,02, ou seja, 2% de 1.000 = 20 duplos recombinantes. Coincidência = observados ÷ esperados = 10 ÷ 20 = 0,5. Interferência = 1 − 0,5 = 0,5. Isso significa que um crossing-over reduziu pela metade a chance de outro crossing-over acontecer no intervalo vizinho — uma interferência considerável.
Questão 6
Um indivíduo tem os genes A e B ligados, com os alelos AB em um cromossomo e ab no homólogo. A frequência de recombinação entre A e B é de 16%. Quais são as frequências esperadas dos quatro tipos de gametas desse indivíduo?
Gabarito: AB 42%, ab 42%, Ab 8% e aB 8%. Os recombinantes somam 16%, divididos igualmente entre os dois tipos: 8% para Ab e 8% para aB. Sobram 84% para os parentais, divididos igualmente: 42% para AB e 42% para ab. A soma confere: 42 + 42 + 8 + 8 = 100%. O erro clássico é dar 16% para cada recombinante — mas 16% é o total dos recombinantes, não de cada um.
Dica do professor
Em questão de mapa gênico, não tente decorar a ordem dos genes: deduza. Primeiro marque quem são os parentais (os mais numerosos) e quem são os recombinantes (os menos numerosos). Depois, faça a conta com calma, sempre dividindo os recombinantes pelo total — e não pelos parentais. Por fim, confira a soma: parentais + recombinantes têm que dar 100%. Se a sua conta não fechar em 100%, alguma coisa saiu errada no caminho, e vale refazer antes de marcar a alternativa.
Atenção/cuidado
Cuidado com três armadilhas clássicas. Primeira: frequência de recombinação nunca passa de 50% — se o seu cálculo der mais que isso, você provavelmente somou os parentais no lugar dos recombinantes. Segunda: o crossing-over não cria alelos novos, só combinações novas; quem cria alelos novos é a mutação. Terceira: centimorgan é distância genética, não distância física em centímetros — não confunda a unidade do mapa com uma medida de comprimento do cromossomo.
Conexão com outras áreas
Os mapas gênicos foram o primeiro passo para o mapeamento do genoma humano: antes de sequenciar o DNA, os geneticistas já sabiam a ordem aproximada dos genes graças às frequências de recombinação. Hoje, o mesmo raciocínio ajuda no melhoramento genético de plantas e animais, na localização de genes ligados a doenças hereditárias e no aconselhamento genético de famílias. Na evolução, o crossing-over é um dos motores da variabilidade sobre a qual a seleção natural atua — sem ele, as populações teriam muito menos combinações genéticas para “testar” ao longo das gerações.
Incidência
Incidência: 🔥 Quente. Ligação gênica e frequência de recombinação aparecem com frequência no ENEM e nos vestibulares, quase sempre como questão de cálculo com cruzamento-teste, mapa de três genes ou interpretação de proporções de descendentes. É um daqueles temas em que quem domina a fórmula e o passo a passo resolve rápido — e quem tenta decorar os números se perde.